
撰文 | 章台柳真核生物的转录是一个高度调控的过程,对维持细胞特性至关重要。G-四链体(G4s)是由富含鸟嘌呤的基因组序列形成的四链DNA二级结构,被认为是富集于活跃调控区域的转录调控者【1】。尽管哺乳动物基因组含有超过50万个可能形成G4结构的DNA序列(潜在G4形成序列,PQSs),但实际形成的G4结构数量有限,且在不同细胞类型中检测到特定的G4亚群。G4定位的失调会破坏基因表达和胚胎分化,并与神经退行性疾病、癌症和加速衰老相关。此外,G4结构可能在转录和DNA复制过程中自发形成【2】。这类非预期的G4以及持续存在的调控性G4会导致DNA损伤,并与基因组缺失和重排相关,进一步凸显了G4结构调控的重要性。
对G4如何被调控以防止转录失调和基因组不稳定,目前尚不清楚。G4常被发现与R-loop(由RNA-DNA杂交体和一条被置换的DNA单链组成的三链结构)相邻。有研究提出,这些R-loop可以通过在G4链对面形成RNA-DNA杂交体来稳定G4结构,从而增强其转录调控功能。然而,这种被称为G-loop的结构尚未在细菌以外的生物中被直接证实。相反,R-loop也可能通过未知机制在异位诱导的G4附近形成,并导致这两种结构的快速解离。邻近的R-loop如何调控G4的命运,以及这一过程是否需要G-loop参与,目前仍不清楚。
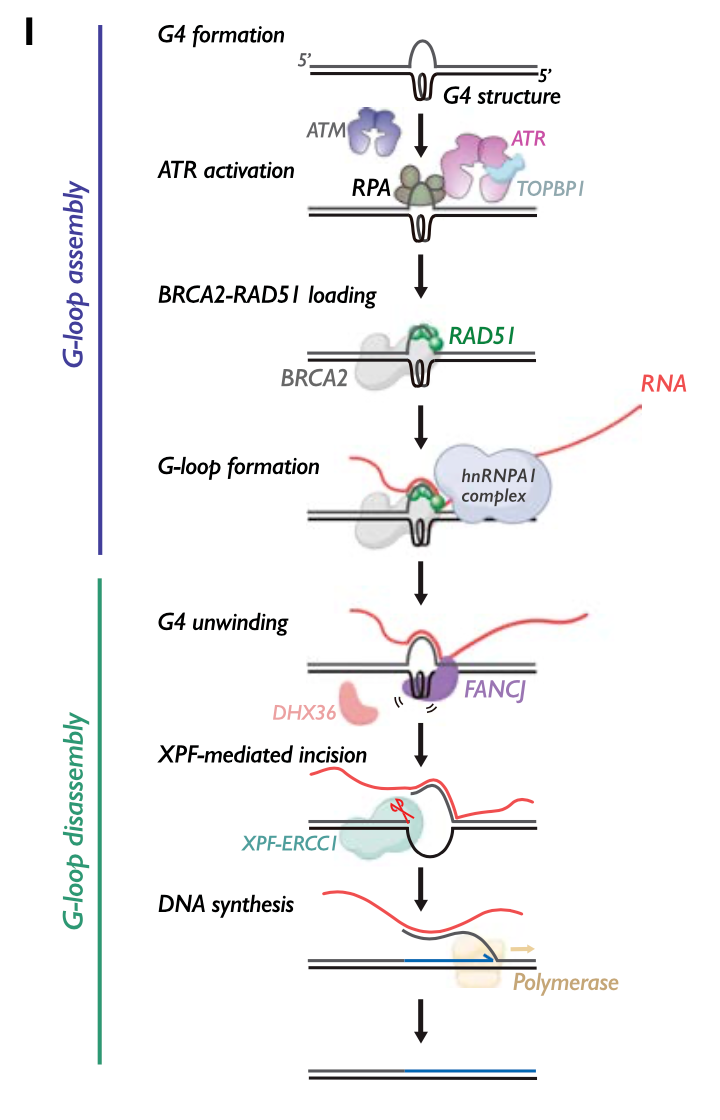
2025年6月12日,来自荷兰莱顿大学医学中心的Puck Knipscheer和Koichi Sato团队在Science杂志上发表文章RNA transcripts regulateG-quadruplex landscapes through G-loop formation,发现RNA转录本通过协调G-loop结构的组装和去组装来调控G4。G-loop的组装需要ATM和ATR激酶的活化,然后通过BRCA2和RAD51介导的同源定向入侵,使RNA与G4链互补配对。G-loop的去组装通过DHX36-FANCJ介导的G4解旋来实现G4结构的解离,触发核酸切割,并通过DNA合成实现杂交链更新。抑制G-loop的去组装会导致G4和R-loop的全基因组积累,导致转录组失调、复制压力和基因组不稳定。研究揭示了一个精细的G-loop组装-去组装机制,该机制不仅调控G4结构图谱,对维持细胞稳态和生存也至关重要。
研究人员首先构建了pG4BOT质粒,该质粒包含一个典型的G4结构,且对面是一个稳定G4的非互补序列,在非洲爪蟾卵提取物(其可重现生理性DNA复制、修复和应激反应)探究G4s与R-loop的互作机制。质粒可诱导出明显的R-loop信号;用RNaseH降解RNA-DNA杂交体,则消除R-loop信号,证实信号的特异性。阻止G4结构形成,则R-loop信号消失。且R-loop是在G4结构的非结构化链上形成的,而非G4链上。无论G4稳定性如何,G-loop组装是对G4结构形成的普遍反应。侵入的RNA源自卵母细胞转录本,且核糖核蛋白促进RNA从G4结构侵入对面的非G4链,来组装G-loop。对G-loop形成机制进行探究,发现G4会导致单链DNA区域的产生,招募RPA(复制蛋白A)的结合,结合单链DNA的RPA通过与磷酸化的TOPBP1相互作用激活ATR到非结构化链上。激活的ATR和ATM的结合促进BRCA2和RAD51在G4区域的招募,随后hnRNPA1积累从而允许G-loop形成。同源介导的G-loop组装促进DNA合成,而DNA的合成需要一个游离的3’端,在非G4链上观察到特异性切割,且这种切割依赖于G-loop组装。这种切割是由XPF-ERCC1核酸内切酶复合物介导的。即G环组装触发XPF-ERCC1的募集,以促进对杂交链的位点特异性切割,从而导致G4互补链的重新合成。由于XPF-ERCC1在具有非结构化臂的单链DNA-双链DNA连接点上作用最有效,研究人员推测这种切割需要G4预先解旋。结果显示,两种DNA解旋酶DHX36和FANCJ的敲除会消除G4的解离和切割,但不影响G-loop组装和XPF-ERCC1的招募。G4解旋是G-loop去组装所必需的,G4解旋和G-loop组装同时发生,且需要BRCA2和侵入的RNA,但不需要下游因子XPF-ERCC1。G4解离是一个高度协调的过程,由G-loop组装启动,导致G4结构解旋,随后进行核酸酶切割和跨越G4序列的DNA合成。随后,研究人员探究了侵入RNA的来源。在G4的对面放置21nt的独特DNA序列,并将G4质粒与含、不含互补序列的转录本共孵育,发现只有当G4质粒与含互补序列的转录本共孵育时,支持G-loop形成和去组装。有效去组装G-loop需要每个G4对应0.4-4个转录本拷贝的化学计量浓度,而更高浓度则会阻止去组装。即G-loop组装和去组装受同源RNA转录本可及性和水平的控制,从而赋予G4调节可塑性。
通过敲除Dhx36和/或Fancj可抑制G-loop的去组装,使用定量CUT&Tag技术绘制基因组G4结构图谱,从而探究G-loop去组装对G4图谱的调控作用。首先,缺失这两个基因导致G4信号增加,但极少在新位点形成G4,而是现有G4位点的信号增加。其次,G-loop组装-去组装动态循环的缺陷会导致G-loop积累和转录失调。再次,通过同源重组(HR)蛋白、DHX36、FANCJ和XPF-ERCC1的协同作用,G-loop组装-去组装循环是抑制G4的一种全局机制。持续的G4结构会导致DNA损伤,使用单细胞EdU测序检测整个S期的复制叉停滞事件和全基因组复制时序,来探究Dhx36和Fancj缺失对DNA复制的影响。两种解旋酶缺失会导致S期早期的复制叉停滞,而这并非由于复制时序改变或复制叉随机形成的G4所致,因为复制停滞仅限于S期早期,即从G1期传递的G-loop导致复制叉停滞。当复制叉与G4结构碰撞时,DHX36和FANCJ可促进G4结构的解离。该机制的缺失会导致持续性复制停滞,双敲除细胞表现出复制应激诱导的基因组不稳定性。只有当复制偶联的G4解离受损时,S期进入时G4的持续性才可能成为复制相关DNA双链断裂(DSBs)的主要原因。即整个细胞周期中通过G-loop组装-去组装进行的G4解离是抵御G4诱导DNA损伤的第一层保护,但如果这一机制失败且G4持续到S期,那么复制偶联的G4解离将提供必要的备份,以确保基因组完整性。
总的来说,该研究揭示了G4结构的调控机制,即RNA转录本从G4对面侵入以组装G-loop,随后G4解旋-解离并伴随G-loop去组装。原文链接:https://www.science.org/doi/10.1126/science.adr0493
本文转载自BioArt
中国生物物理学会官方订阅号,为BSC会员及生物物理领域专业人士服务。
投稿及授权请联系:bscoffice@bsc.org.cn。
微信号:BSC-1979
原标题:《【科技前沿】Science | RNA转录本通过形成G-loop调控G-四链体结构》